课后补充--抗体和BCR/TCR的区别
原创
课后补充--抗体和BCR/TCR的区别
原创
追风少年i
发布于 2026-09-24 08:39:28
发布于 2026-09-24 08:39:28
作者,Evil Genius
有人又问我一直学习有没有用,还是那句话,看大家的角度,如果指的是学习能不能带来收益,获取更多的收入,那这个我真的不知道,尤其科研这种,投入多,产出极少,没有稳定的收入或者编制兜底,不建议全身心投入到科研行业,如果大家想在城市买房买车稳定下来,科研行业更不可能,除非大家是那种科研的顶尖人才,例如王虹这样的。
和高中同学相比,我已经远远落后了,我主要做生信数据分析,混的好的同学的专业我也统计了一下,主要集中在自动化、车辆工程、通讯、军工等硬核专业,这些专业国企、央企多,收入高,待遇好,前景广大,我当初报专业(2011年),一般来讲只要第一志愿,第二、第三志愿通常不被考虑,所以瞎写写,没想到被1A的第二志愿给截住了,整个人生的命运发生了巨大的改变,如果正常被1B的第一志愿自动化录取,整个人生会不会更好?
这一篇我们来学习一下基础知识,抗体和BCR/TCR。
做过单细胞 5’ + VDJ的应该都知道TCR/BCR的结构吧。
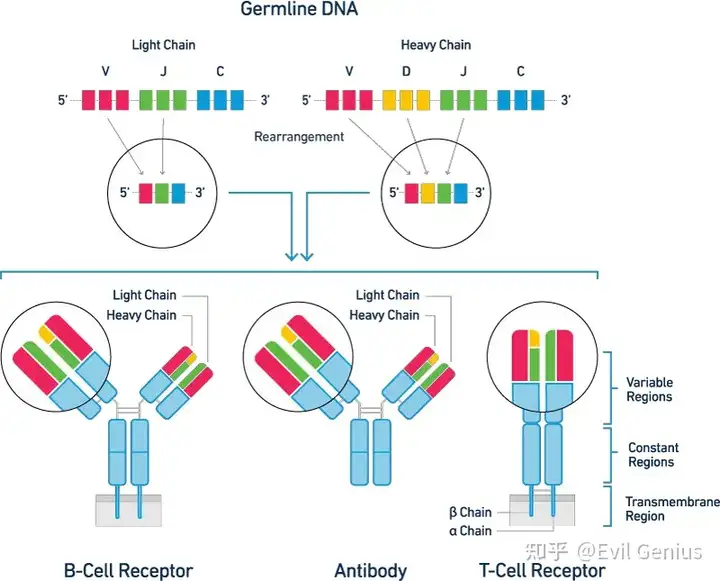
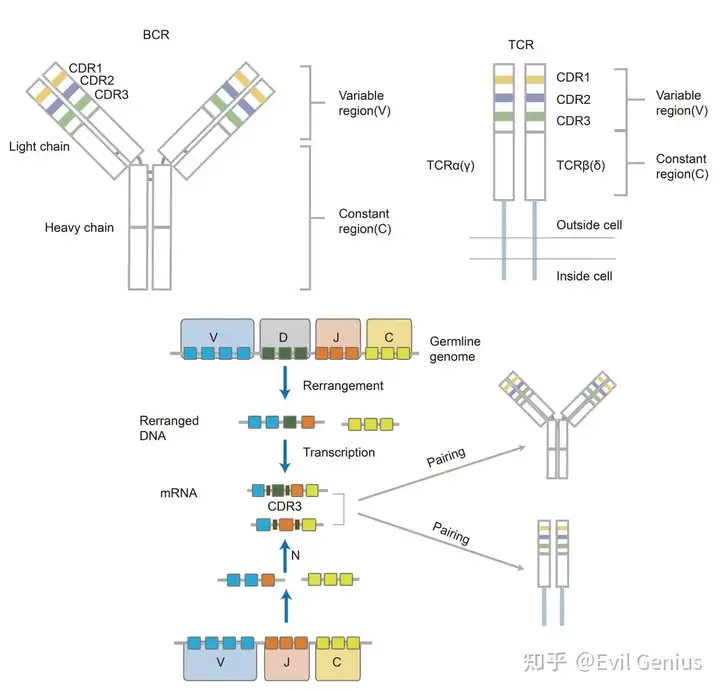
最重要的先记住:
V(D)J 是“产生受体多样性的基因重排机制”;BCR 和 TCR 是淋巴细胞膜上的抗原受体;抗体是 B 细胞产生的可溶性免疫球蛋白。 抗体和 BCR 在抗原结合部分高度相似,而 TCR 虽然结构上与它们相似,但识别对象和工作方式明显不同。
一、先看完整关系
可以把整个体系理解成:
基因组DNA
                            │
                            ↓
                    V(D)J gene recombination
                            │
             ┌──────────────┴──────────────┐
             ↓                             ↓
           B细胞                           T细胞
             │                             │
             ↓                             ↓
           BCR                            TCR
             │                             │
      ┌──────┴──────┐              ┌──────┴──────┐
      ↓             ↓              ↓             ↓
   Heavy chain   Light chain      TCR α       TCR β
      │             │              │             │
      └──────┬──────┘              └──────┬──────┘
             ↓                            ↓
          BCR/抗体                       TCR
             │                            │
             ↓                            ↓
       直接识别抗原                  识别 peptide-MHC
所以它们不是平行的四个概念。
二、四个概念分别是什么?
概念 | 本质 | 所在层级 | 核心作用 |
|---|---|---|---|
V(D)J | 基因重排机制 | DNA | 产生受体多样性 |
BCR | B细胞抗原受体 | 膜蛋白 | 识别抗原并启动B细胞信号 |
抗体 | 分泌型免疫球蛋白 | 蛋白 | 在细胞外结合/中和抗原 |
TCR | T细胞抗原受体 | 膜蛋白 | 识别 peptide-MHC 并启动T细胞信号 |
所以不能简单说:
抗体 = BCR = TCR = VDJ
它们属于不同层次。
三、V(D)J到底是什么?
V(D)J不是蛋白质。
它是:
B细胞和T细胞发育过程中,通过基因片段重排产生抗原受体多样性的机制。
三个字母:
- V = Variable
- D = Diversity
- J = Joining
例如 BCR 的重链:
DNA

V1 V2 V3 V4 V5 ...
D1 D2 D3 ...
J1 J2 J3 ...

          ↓ V(D)J重排

       V3 ─ D2 ─ J1
             │
             ↓
        VDJ exon
             │
             ↓
       Heavy chain
四、不同受体使用的 VDJ 组合并不一样
这是理解单细胞 VDJ 很重要的一点。
BCR/抗体重链
V + D + J即:
IGH VDJ
BCR/抗体轻链
V + J没有 D。
包括:
- IGK
- IGL
TCR β链
V + D + J即:
TRB VDJ
TCR α链
V + J即:
TRA VJ
因此:
BCR:

IGH = V + D + J
IGK = V + J
IGL = V + J

TCR:

TRB = V + D + J
TRA = V + J
五、为什么 V(D)J 能产生这么大的多样性?
主要有几层。
① V/D/J组合
比如:
V1-D1-J1
V1-D1-J2
V2-D1-J1
V2-D2-J3
...
② Junctional diversity
V、D、J连接过程中会发生碱基的随机删除和添加。
例如:
V ───────── D

       ↓

V ─ NNN ─ D
这些额外核苷酸会改变 CDR3。
③ Heavy/Light chain pairing
BCR:
VH + VL
   ↓
Antibody binding site
不同 VH 与 VL 配对,又产生新的组合。
六、所以 CDR3 和 V(D)J有什么关系?
这是非常关键的知识点。
抗体和 TCR 的抗原结合区域都存在:
- CDR1
- CDR2
- CDR3
其中 CDR3通常高度多样化。
而 CDR3 与 V(D)J junction 密切相关。
可以简单理解:
V          D          J
        │          │          │
        └────┬─────┴─────┬────┘
             ↓
           CDR3
             ↓
     antigen recognition
因此:
V(D)J重排 → 产生不同的 CDR3 → 产生不同的抗原识别能力。
这也是为什么单细胞 VDJ 数据里面,CDR3 是非常重要的信息。
七、BCR到底是什么?
BCR = B-cell receptor
即:
B细胞表面的抗原受体。
它本质上是:
膜结合形式的免疫球蛋白 + 信号传导复合物
经典 BCR:
Antigen
                    ↓
                 ★★★
                /   \
               /     \
             VH       VL
              │       │
              │       │
              └───┬───┘
                  │
             membrane Ig
                  │
             ─────┼─────
                  │
               B cell
BCR本身负责:
识别抗原。
但真正把信号传进细胞的是与它关联的:
- CD79A
- CD79B
所以可以理解为:
Antigen
   ↓
BCR
   ↓
CD79A/B
   ↓
B-cell signaling
八、抗体又是什么?
抗体也是免疫球蛋白。
但它主要是:
B细胞分泌到细胞外的可溶性形式。
例如 IgG:
Antigen
                ↓
               ★
              / \
             /   \
            Fab Fab
             \   /
              \ /
              Fc
所以:
BCR
膜上的 immunoglobulin抗体
分泌出来的 immunoglobulin九、BCR和抗体其实非常接近
这是最容易产生疑问的地方。
一个 B 细胞经过 V(D)J 重排后,产生一套特定的:
VH + VL那么这个 B 细胞的:
BCR 和它分泌的抗体
通常拥有相同的抗原结合特异性。
可以理解成:
B cell
              │
       V(D)J recombination
              │
           VH + VL
              │
       ┌──────┴──────┐
       ↓             ↓
      BCR           抗体
       │             │
     膜结合          分泌
       │             │
       └─────┬───────┘
             ↓
       相同/高度相似的
       antigen specificity
这就是为什么:
BCR和抗体不是完全相同的东西,但抗原结合部分高度相关。
十、BCR和抗体最主要区别在哪里?
特征 | BCR | 抗体 |
|---|---|---|
位置 | B细胞膜表面 | 细胞外/体液 |
形式 | 膜结合 | 可溶性 |
抗原结合 | 有 | 有 |
VH/VL | 有 | 有 |
CDR | 有 | 有 |
V(D)J来源 | 有 | 有 |
Fc | 有相关Ig恒定区 | 有 |
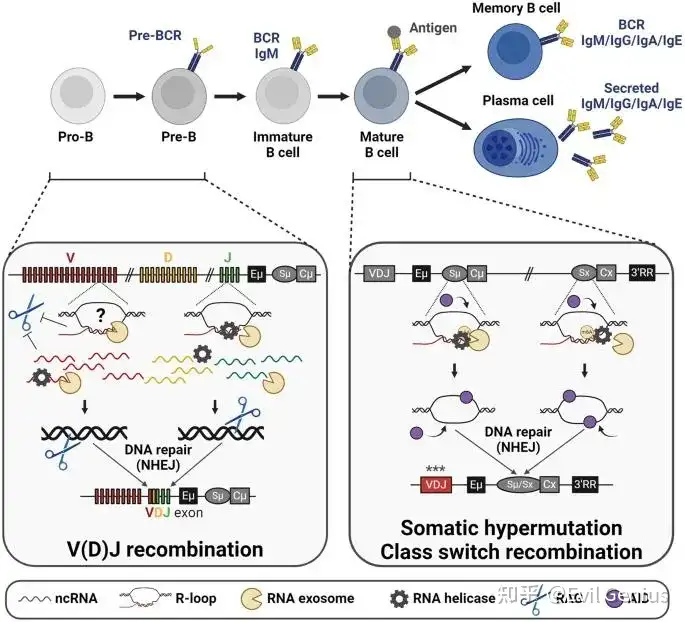
信号转导 | 可以启动B细胞信号 | 通常不直接作为B细胞受体 |
主要功能 | 抗原识别+B细胞激活 | 中和、调理、补体等 |
十一、BCR如何变成“抗体”?
B细胞激活以后,可以分化成:
浆细胞(plasma cell)
浆细胞大量产生并分泌抗体。
B cell
  │
  │ antigen stimulation
  ↓
Activated B cell
  │
  ↓
Plasma cell
  │
  ↓
大量分泌 antibody
因此:
BCR
 ↓
B-cell activation
 ↓
Plasma cell
 ↓
Antibody secretion
十二、TCR又是什么?
TCR = T-cell receptor
它是:
T细胞表面的抗原受体。
最常见的是:
αβ TCR
TCR
       /   \
     Vα     Vβ
      │      │
     Cα     Cβ
       \    /
        │  │
        │  │
────────┼──┼────────
       T cell
结构上和抗体/BCR确实非常接近。
因为它们都属于:
Immunoglobulin superfamily
十三、但 TCR 与抗体最重要的区别:它通常不直接识别完整抗原
这是最关键的区别。
抗体:
Antibody
    ↓
Protein antigen
    ↓
Epitope
TCR:
Protein
   ↓
peptide
   ↓
MHC
   ↓
peptide-MHC
   ↓
TCR
所以经典 αβ TCR 的识别对象是:
peptide–MHC(pMHC)复合物
而不是裸露的完整蛋白。
十四、因此抗体和 TCR 的“表位”概念也不同
抗体:
Epitope
TCR:
peptide presented by MHC
可以画成:
抗体:

         Antibody
             ↓
      ┌─────────────┐
      │   Protein   │
      │      ★      │
      └─────────────┘
            Epitope

TCR:

          TCR
           ↓
       ┌───────┐
       │peptide│
       ├───────┤
       │  MHC  │
       └───────┘
          pMHC
十五、为什么 TCR 的结构和抗体这么像?
因为两者都采用类似的免疫球蛋白折叠。
抗体
VH ── VL
│      │
CDRs  CDRs
TCR
Vα ── Vβ
│      │
CDRs  CDRs
所以结构层面:
抗体 | TCR |
|---|---|
VH | Vα |
VL | Vβ |
CDR-H1 | CDR1α |
CDR-H2 | CDR2α |
CDR-H3 | CDR3α |
CDR-L1 | CDR1β |
CDR-L2 | CDR2β |
CDR-L3 | CDR3β |
但这只是结构上的对应,不意味着功能完全相同。
十六、CDR的功能又有什么区别?
抗体
6个 CDR 都可能参与抗原识别:
VH
 ├── CDR-H1
 ├── CDR-H2
 └── CDR-H3

VL
 ├── CDR-L1
 ├── CDR-L2
 └── CDR-L3
尤其:
CDR-H3通常具有很重要的作用。
TCR
Vα
 ├── CDR1α
 ├── CDR2α
 └── CDR3α

Vβ
 ├── CDR1β
 ├── CDR2β
 └── CDR3β
通常可以粗略理解:
- CDR1/2:更多参与 MHC 接触
- CDR3:更多参与 peptide 识别
因此:
TCR设计不能简单照搬抗体 CDR设计。
十七、从结构设计角度比较
抗体设计
Target protein
      ↓
Epitope
      ↓
Antibody scaffold
      ↓
CDR design
      ↓
VH/VL
      ↓
Antigen-antibody docking
      ↓
Affinity + specificity
TCR设计
Target antigen
      ↓
Antigenic peptide
      ↓
MHC presentation
      ↓
pMHC structure
      ↓
TCR scaffold
      ↓
CDR design
      ↓
TCR-pMHC docking
      ↓
Affinity + specificity
最大的区别就在这里:
抗体设计主要围绕 antigen–antibody interface;TCR设计必须围绕 peptide–MHC–TCR 三者的界面。
十八、为什么单细胞 VDJ 能把抗体和 TCR 都测出来?
因为 VDJ 是它们共同的上游机制。
单细胞 VDJ:
Single cell
    ↓
RNA
    ↓
V(D)J transcripts
    ↓
sequence
对于 B 细胞:
IGH + IGK/IGL
        ↓
BCR sequence
        ↓
VH/VL
        ↓
CDR3
对于 T 细胞:
TRA + TRB
        ↓
TCR sequence
        ↓
Vα/Vβ
        ↓
CDR3α/CDR3β
十九、所以 scVDJ 数据里最重要的几个概念
例如一个 B 细胞:
Cell001

IGH:
IGHV3-xx
IGHDx-x
IGHJx

CDR3:
CARDRGxxxxx

IGK:
IGKVx-x
IGKJx

CDR3:
Cxxxxx
这些信息可以告诉你:
这个细胞的 BCR 是什么。
然后可以进一步:
BCR sequence
      ↓
antibody sequence
      ↓
structure prediction
      ↓
antigen-antibody docking
      ↓
epitope analysis
这就是:
单细胞 VDJ → 抗体结构 → 抗原结合
之间的桥梁。
二十、BCR还有一个抗体没有的特点:它是信号受体
这是两者功能上的重要差异。
BCR:
Antigen
   ↓
BCR
   ↓
CD79A/CD79B
   ↓
signaling
   ↓
B-cell activation
抗体:
Antigen
   ↓
Antibody
   ↓
Neutralization
Fc receptor interaction
Complement activation
etc.
所以:
BCR首先是“细胞上的传感器”;抗体主要是“分泌出去执行免疫功能的分子”。
二十一、TCR又是另外一套信号系统
TCR:
pMHC
  ↓
TCR
  ↓
CD3 complex
  ↓
T-cell signaling
  ↓
T-cell activation
因此:
BCR → CD79A/B → B cell signaling

TCR → CD3 → T cell signaling
二十二、抗体和 TCR 的“自由度”也不同
这是做结构研究时很重要的一点。
抗体:
可以作为可溶性分子存在。
例如:
Antibody
    ↓
blood
    ↓
tissue
    ↓
bind antigen
TCR:
通常是 T 细胞膜上的受体。
TCR
 │
 │ membrane
────────────
 T cell
所以实验上常见:
- soluble antibody
- Fab
- scFv
- nanobody
而 TCR 则经常研究:
- soluble TCR
- TCR-pMHC complex
- TCR-like molecules
二十三、抗体还有一个 TCR 没有的巨大特点:类别转换
B细胞经过激活后可以发生:
Class-switch recombination
例如:
IgM
 ↓
IgG
 ↓
IgA
 ↓
IgE
这里非常重要:
抗原结合的 VH/VL 区域可以保持相同,而改变的是恒定区/效应功能。
例如:
same VH/VL
             │
     ┌───────┼────────┐
     ↓       ↓        ↓
    IgG     IgA      IgE
所以:
同一个 BCR 克隆可以产生不同抗体类别。
TCR没有这种典型的 antibody class switching。
二十四、抗体还会发生体细胞超突变
B细胞活化后,在生发中心等过程中可以发生:
Somatic hypermutation
然后通过选择获得:
Affinity maturation
可以理解成:
Original antibody
       ↓
Somatic hypermutation
       ↓
many variants
       ↓
selection
       ↓
higher-affinity antibody
这也是抗体和 TCR 在成熟机制上的一个重要区别。
二十五、把“V(D)J”和“抗体成熟”区分开
这是学习免疫学时特别容易混淆的地方。
第一阶段:V(D)J recombination
产生初始受体多样性:
V + D + J
   ↓
unique BCR
发生在 B/T 细胞发育阶段。
第二阶段:Somatic hypermutation
主要发生在活化 B 细胞:
BCR
 ↓
mutation
 ↓
variants
 ↓
selection
 ↓
affinity maturation
第三阶段:Class switch
IgM
 ↓
IgG / IgA / IgE
因此可以画成:
V(D)J recombination
        ↓
   naive BCR
        ↓
   antigen stimulation
        ↓
 ┌──────┴────────┐
 ↓               ↓
SHM           Class switch
 ↓               ↓
affinity       IgG/IgA/
maturation     IgE...
二十六、这对“抗体设计”意味着什么?
如果计算设计抗体,实际上有两条路线。
路线A:从天然 BCR/VDJ 出发
scVDJ
 ↓
VH/VL
 ↓
CDR3
 ↓
抗体结构预测
 ↓
抗原-抗体 docking
 ↓
优化
这属于:
从天然免疫 repertoire 中寻找候选抗体。
路线B:从靶蛋白结构出发
Target structure
 ↓
Epitope
 ↓
Antibody scaffold
 ↓
CDR design
 ↓
VH/VL sequence
 ↓
Structure prediction
 ↓
Docking
 ↓
Rosetta / MD
这属于:
Structure-based / de novo antibody design。
两条路线可以结合。
二十七、最完整的一张“从DNA到抗体”的图
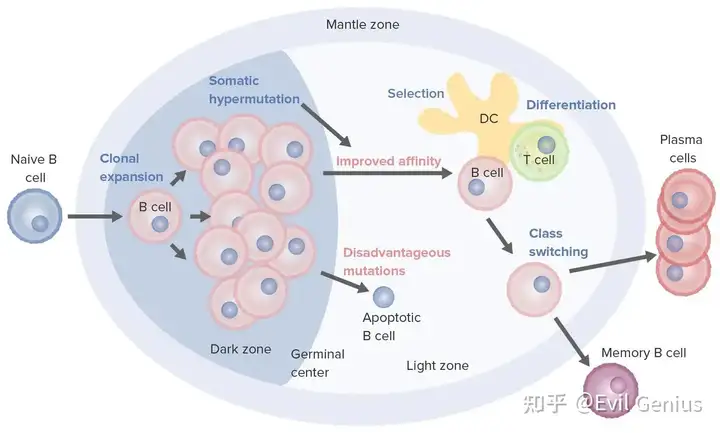
Genome DNA
                     │
                     ↓
              V(D)J recombination
                     │
                     ↓
                BCR sequence
                     │
                     ↓
                 BCR protein
                     │
              ┌──────┴──────┐
              │             │
          membrane       B-cell activation
              │             │
              │             ↓
              │       Somatic hypermutation
              │             │
              │             ↓
              │       Affinity maturation
              │             │
              │             ↓
              │        Class switching
              │             │
              │             ↓
              └──────→ Plasma cell
                            │
                            ↓
                         Antibody
二十八、再把 TCR 放进来
V(D)J recombination
                               │
                  ┌────────────┴────────────┐
                  ↓                         ↓
                B cell                    T cell
                  ↓                         ↓
                 BCR                       TCR
                  ↓                         ↓
            Heavy + Light               α + β
                  ↓                         ↓
               Antibody                    TCR
                  ↓                         ↓
          Direct antigen            peptide-MHC
             recognition             recognition
                  ↓                         ↓
           B-cell response              T-cell response
二十九、最终用一张表彻底区分
项目 | V(D)J | BCR | 抗体 | TCR |
|---|---|---|---|---|
本质 | DNA重排机制 | 膜受体 | 可溶性蛋白 | 膜受体 |
主要细胞 | B/T细胞发育期 | B细胞 | 浆细胞等产生 | T细胞 |
是否蛋白 | ❌ | ✅ | ✅ | ✅ |
是否膜蛋白 | ❌ | ✅ | ❌ | ✅ |
V(D)J参与 | 本身就是机制 | ✅ | ✅ | ✅ |
链 | — | H/L | H/L | α/β |
VH/VL | — | ✅ | ✅ | ❌ |
Vα/Vβ | — | ❌ | ❌ | ✅ |
CDR | 产生其编码基础 | ✅ | ✅ | ✅ |
CDR3多样性 | 重要来源 | ✅ | ✅ | ✅ |
直接识别完整蛋白 | — | ✅ | ✅ | 通常❌ |
识别pMHC | — | 通常❌ | 通常❌ | ✅ |
分泌 | — | ❌ | ✅ | ❌ |
B/T细胞信号 | — | B细胞 | 通常不直接 | T细胞 |
SHM | ❌ | B细胞活化后相关 | 可发生 | 经典TCR不发生 |
Class switch | ❌ | B细胞相关 | IgM→IgG/IgA/IgE | ❌ |
Affinity maturation | ❌ | B细胞相关 | 典型特征 | ❌ |
三十、最值得记住的“层级关系”
【DNA层】
                       │
                 V(D)J重排
                       │
                       ↓
                 【序列层】
                       │
              V/J/D + CDR3
                       │
             ┌─────────┴─────────┐
             ↓                   ↓
          BCR序列              TCR序列
             │                   │
             ↓                   ↓
       【蛋白质层】          【蛋白质层】
             │                   │
       Heavy + Light           α + β
             │                   │
             ↓                   ↓
            BCR                 TCR
             │                   │
       ┌─────┴─────┐             │
       ↓           ↓             ↓
    membrane     secreted      membrane
       │           │             │
       ↓           ↓             ↓
      BCR        抗体           TCR
       │           │             │
       ↓           ↓             ↓
   B-cell      extracellular    peptide-
   signaling    antigen         MHC
                binding        recognition
最后浓缩成四句话:
① V(D)J: 负责通过基因重排制造抗原受体多样性。
② BCR: 是 B 细胞膜上的抗原受体,其可变区来自 V(D)J。
③ 抗体: 是 B 细胞/浆细胞产生的可溶性免疫球蛋白,通常与 BCR 具有相同或高度相似的抗原结合特异性。
④ TCR: 是 T 细胞膜上的抗原受体,虽然结构和抗体/BCR相似,也来自 V(D)J 重排,但经典 αβ TCR 的主要任务是识别。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号