顶刊分享(visium HD & xenium)--人类心脏发生动力学及其在21三体综合征中的破坏
原创
顶刊分享(visium HD & xenium)--人类心脏发生动力学及其在21三体综合征中的破坏
原创
追风少年i
发布于 2026-10-09 08:59:00
发布于 2026-10-09 08:59:00
作者,Evil Genius
AI现在可以总结文献,但是如果大家直接AI总结文章来看,相当于囫囵吞枣,科研细节决定成败的案例比比皆是,大家还是要看原文,加上自己的理解,不要看个大概就过去了。
古法阅读文献或许很慢,但是在于细,科研图快是没有用的,尤其在阅读的过程中,把研究者替换成自己,遇到相同的情况,自己会怎么做。
今日我们分享文献
研究背景与总体目标
人类心脏发生需要由心脏中胚层和神经嵴来源的多种细胞类型之间协调相互作用。这些细胞群体 orchestrating 关键过程,如窦房结(SAN,心脏主要起搏器)的形成以及心肌细胞的成熟。这些机制依赖于细胞状态的精确时空组织及其整合到指导形态发生和功能成熟的多细胞生态位中。尽管遗传、表观遗传和环境扰动可破坏这些过程并导致先天性心脏病(CHD),但其背后的细胞和空间机制仍不完全清楚。值得注意的是,21三体综合征(T21)中CHD发病率显著升高,凸显了心脏发育对基因剂量改变的敏感性。
尽管已鉴定出众多CHD相关基因,但对于人类心脏发育过程中早期分子和细胞扰动如何出现并组织,仍缺乏全面认识。尽管人多能干细胞来源的心肌细胞为心肌细胞身份和成熟提供了见解,但它们不能完全再现体内发育,特别是在组织组织和细胞多样性方面。近期利用转录组学和空间组学方法对胎儿心脏进行的研究揭示了空间基因表达模式和细胞类型异质性,但这些研究在发育覆盖范围、空间分辨率或数据类型方面通常有限。此外,用于识别和注释发育中心脏细胞生态位的稳健方法(适用于各种分辨率的空间组学数据)尚未建立。
研究的目标是构建一个空间分辨的多模态人类心脏发育图谱(4-20 孕周后,PCW),整合单细胞转录组数据、配对的单核ATAC测序(snATAC-seq)和空间转录组学; delineate 21个组织生态位;引入TissueTypist(一种跨空间分辨率注释生态位的分层分类器);利用OrganAxis捕捉心室透壁组织和SAN起搏器亚型的空间进展;并比较年龄匹配的整倍体和T21心脏,揭示T21心脏中致密心室心肌细胞(vCM)的耗竭和凋亡增加。
结果一、多模态人类心脏发育图谱
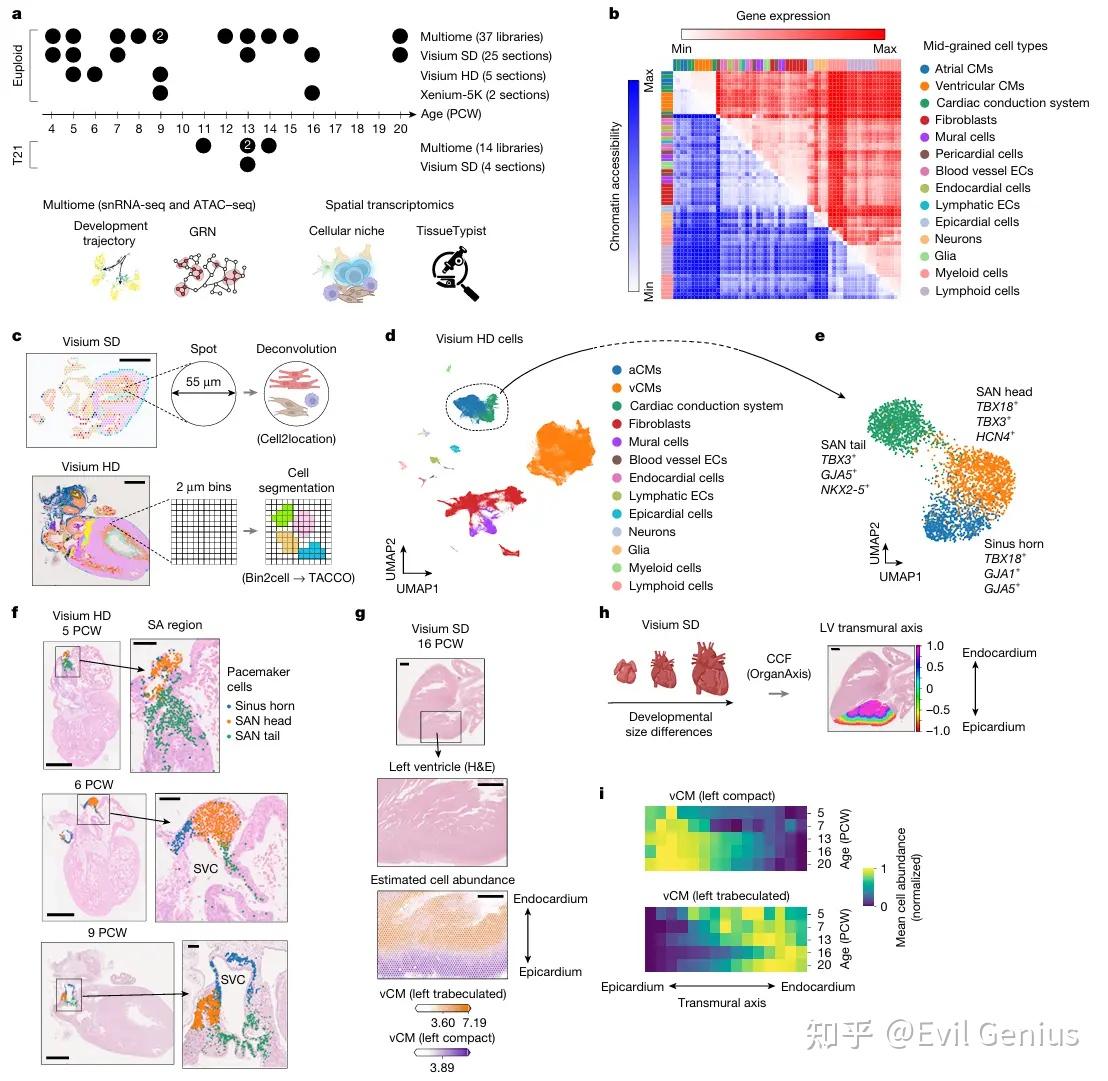
研究者对4-20 PCW的整倍体胎儿心脏进行了scRNA-seq、配对的snRNA-seq和ATAC-seq(Multiome,10x Genomics)以及空间转录组学分析。经过质量控制,保留了297,473个细胞和细胞核。空间数据包括来自10个心脏的32个捕获区域,涵盖Visium标准分辨率(SD;55 μm)、Visium高分辨率(HD;2 μm)和Xenium数据集。
细胞类型注释从配套研究转移,该研究定义了三级分层系统:6个粗粒度标签、14个中粒度标签和63个细粒度标签。在Multiome测序的细胞核中,来自11个心脏(跨越4-20 PCW)的167,022个细胞核也通过了ATAC-seq质量控制。为每个细粒度细胞类型识别了染色质可及区域(峰),其并集共产生508,040个峰。总体上,66%的峰与ENCODE候选顺式调控元件重叠。ATAC和RNA图谱之间观察到高度一致性:转录定义的细胞类型在ATAC UMAP嵌入中明显分离,Mantel检验显示RNA和ATAC模态之间的细胞类型间距离矩阵强相关(r = 0.76)。
细胞类型的空间映射
研究者对Visium SD和高分辨率空间数据集采用了不同的分析策略:
- Cell2location用于将细胞类型丰度映射到跨越4-20 PCW的Visium SD斑点。
- Visium HD数据(5、6和9 PCW心脏样本)使用bin2cell从2 μm bin聚合到细胞,并应用基于参考的组成注释(TACCO),产生213,873个Visium HD细胞。
- Xenium数据(9和16 PCW心脏样本)通过多模态形态学细胞分割算法和TACCO产生362,277个Xenium细胞。
通过标记驱动的手动注释,识别出的细胞类型与单细胞和单核数据一致。
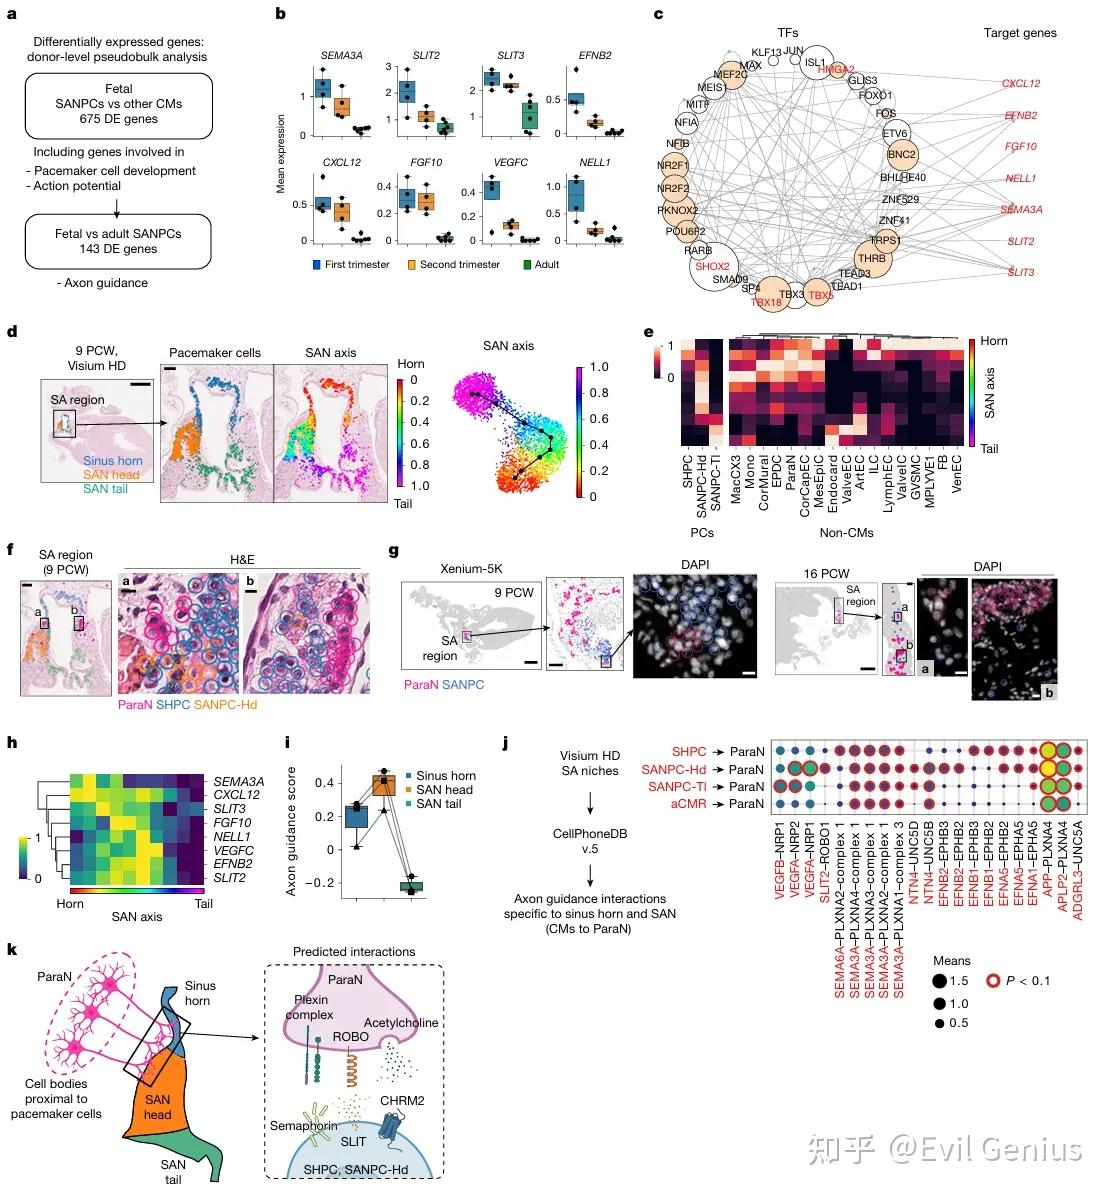
对Visium HD数据集的单细胞分析在SAN区域识别出约3,300个起搏器细胞。对这些细胞进行亚聚类,揭示了三个不同的亚群,其标记对应于窦角起搏器细胞(SHPC)、SAN头部起搏器细胞(SANPC-Hd)和SAN尾部起搏器细胞(SANPC-Tl)。尽管最近已使用snRNA-seq对人类胎儿起搏器细胞亚型进行了分析,但本研究的数据集是首批将其映射到相应结构并确认其注释的研究之一。在Xenium-5K数据集中,尽管基因面板无法分辨起搏器细胞亚群,但SAN起搏器细胞与多种细胞类型(包括神经细胞、冠状细胞、成纤维细胞和心外膜细胞)空间邻近。
Visium SD数据集覆盖的发育范围比Visium HD数据更广。对vCM致密层和肌小梁群体的空间映射验证了这些注释,显示它们与相应H&E图像中的组织学结构一致。为了分析心室壁中致密和肌小梁心肌细胞的时空转变,研究者使用OrganAxis在左心室手动注释的心外膜和心内膜层之间定义了透壁轴。这提供了一个共同的空间坐标框架,用于比较不同发育时间点和不同大小心脏的特征(如基因和细胞类型丰度)。在发育过程中,致密心肌细胞沿该轴的丰度分布从心外膜处的紧密分布转变为更靠近心内膜的分散分布,而肌小梁心肌细胞观察到相反的转变。此外,核密度在较老的心脏中最高,特别是朝向心外膜边界。这些发现表明,致密心肌细胞群体在妊娠中期心脏中扩张。
结果二、发育过程中的细胞生态位
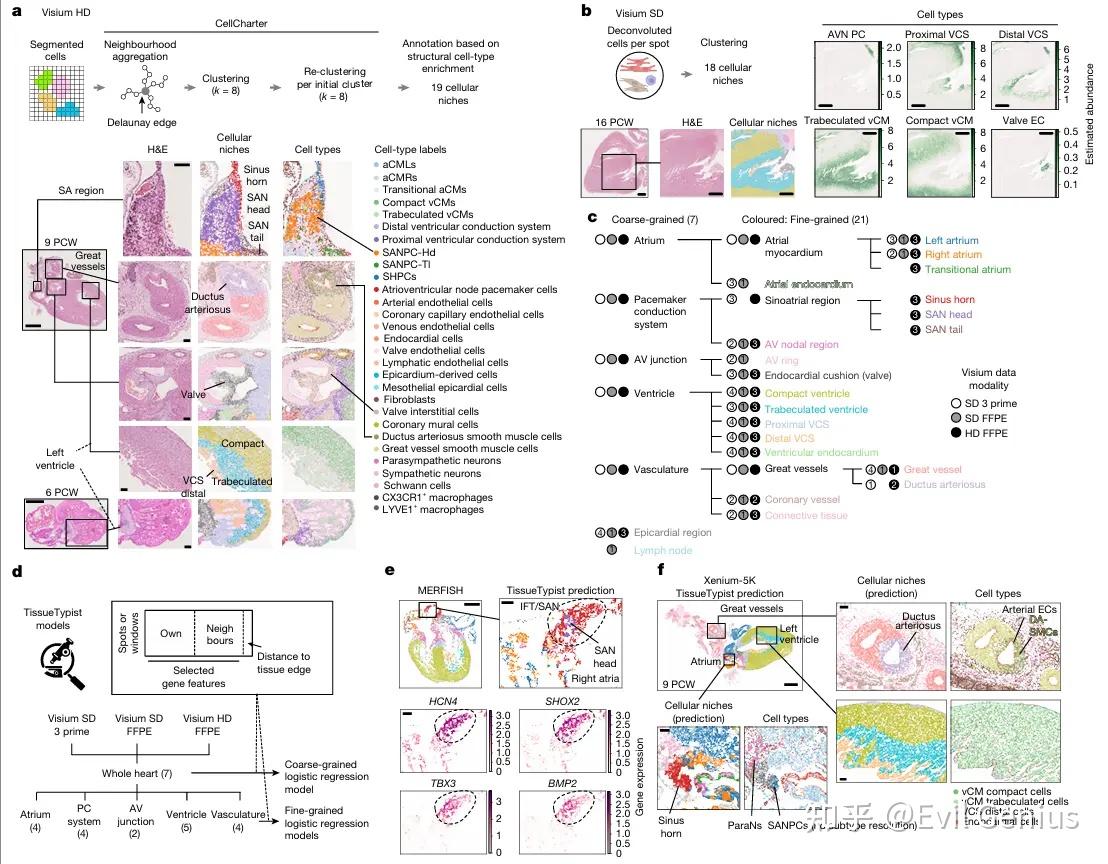
使用CellCharter对Visium HD数据进行分层细胞生态位预测分析,识别出19个空间连贯的心脏生态位。值得注意的是,在SAN区域,细粒度聚类 delineated 了对应于先前描述的起搏器细胞群体的不同子域,包括窦角相关、SAN头部和SAN尾部区域。在SAN之外,该框架解析了多个区域的解剖学上不同的生态位:
- 在流出道中,动脉导管与相邻大血管生态位分离,其特征在于独特的平滑肌细胞群体。
- 在瓣膜区域,识别出一个专门的瓣膜生态位,其特征是瓣膜间质细胞与心内膜细胞的共定位。
- 在心室心肌中,解析出分层组织,区分了致密和肌小梁心肌细胞以及心室传导系统组件,且模式在不同发育阶段一致。
为了评估计算定义生态位的生物学有效性,研究者将其空间分布与配对的H&E图像衍生的组织学注释进行了比较,证明CellCharter定义的生态位与组织学定义的解剖区域之间高度一致。
对于Visium SD数据集,研究者对来自斑点×细胞类型丰度矩阵的整合潜在空间进行Leiden聚类。根据细胞类型组成和通过专家注释H&E图像识别的组织学特征对聚类进行注释。这种方法揭示了在不同发育阶段保守的空间连贯基因表达特征。Visium SD数据集中的每个注释组织结构显示出反映独特多细胞生态位的不同细胞类型丰度组合:
- LYVE1+组织驻留巨噬细胞在血管相关结构和心外膜中富集。
- 心室致密心肌显示冠状血管细胞(包括毛细血管内皮细胞和周细胞)高丰度。
- 大血管外膜富集神经祖细胞,与血管平滑肌细胞中神经吸引特征增加一致。
- 与已知发育时间一致,副交感神经元在心脏各区域比交感神经元更丰富,特别是在早期阶段,神经元群体主要定位于心房相关组织。
总之,这些观察表明,在发育过程中,不同的细胞组成被组织成跨心脏区域的空间连贯多细胞生态位。Visium HD以接近单细胞分辨率解析细粒度细胞结构,而Visium SD提供更广泛组织背景的互补覆盖,使得跨尺度一致表征心脏组织成为可能。
结果三、TissueTypist用于生态位注释
开发了TissueTypist(https://github.com/Teichlab/TissueTypist),一种逻辑回归分类器,可将生态位注释转移到新的空间数据集。为了训练一个跨Visium平台泛化的分类器,研究者使用7个粗粒度和21个细粒度生态位的层级统一了Visium SD 3'、Visium SD FFPE和Visium HD FFPE数据集的生态位注释。缺乏细粒度生态位注释分辨率的样本保留适当的中间标签。为了将HD数据带到与SD相同的空间粒度,研究者使用滑动窗口方法将HD细胞聚合为伪bulk窗口。TissueTypist模型不仅在内在转录组特征上训练,还在邻近表达和组织边缘距离上训练。预测工作流设计与各种空间分辨率的数据集兼容。
为了评估TissueTypist的稳健性,研究者使用留一section-out框架在所有空间模态中进行了系统交叉验证。在跨越Visium SD 3'、Visium SD FFPE和Visium HD数据集的14个section中,模型在粗粒度水平上实现了一致的高性能(加权F1 = 0.88-0.98),在细粒度生态位水平上性能稳定。性能因个体生态位而异,每个生态位的准确性与训练数据中的代表性正相关(Pearson r = 0.58)。性能降低主要见于代表性稀疏的生态位,而大多数代表性良好的生态位以高准确度分类。对混淆结构的分析显示,误分类主要局限于正确的粗粒度解剖类别内,表明错误主要反映密切相关的亚结构之间的模糊性,而不是错误分配到无关组织。值得注意的是,在边界相关生态位(包括"SA node-tail"和"epicardial region")观察到增加的混淆,这与组织界面处观察到的转录和空间连续性一致。
为了评估跨空间平台和数据集的泛化性,研究者将训练好的模型应用于独立的高分辨率数据集,包括先前发表的MERFISH数据集和本研究的Xenium-SK数据。观察到TissueTypist预测与原始MERFISH细胞生态位注释之间的一致性(Cohen's κ = 0.51,准确度 = 0.62,宏观F1 = 0.49),置换检验确认显著性(P < 0.001)。值得注意的是,主要解剖隔室,包括心房区域、心室层和流出道相关结构,被一致地恢复。在MERFISH数据集中,流入道和SAN最初被注释为单个隔室,TissueTypist将该区域解析为对应于窦角和SAN头部的不同亚结构。这种细化得到了典型SAN相关标记(TBX3和BMP2)的空间异质性表达以及SAN标记(HCN4和SHOX2)更广泛表达的支持。在Xenium数据中观察到类似水平的空间细化,TissueTypist delineated 了独立衍生的细胞类型注释中未解析的生态位,如窦角。其他结构,包括动脉导管和心室隔室,也被精确预测。这些结果表明,TissueTypist能够在独立数据集和空间转录组平台中一致地、细粒度地识别专门的心脏生态位。
在独立的人类肺Visium数据集中,TissueTypist恢复了主要解剖生态位,这为框架在心脏组织之外的更广泛适用性提供了支持。
结果四、发育中的SAN生态位
在SAN起搏器细胞(SANPC)中上调的基因富集于核心起搏电生理特性的过程。使用SCENIC+从Multiome数据预测的基因调控网络(GRN)识别出已建立的起搏器调控因子,包括ISL1、SHOX2、TBX3、TBX5和TBX18,作为控制起搏器特征和离子通道的枢纽。与成人起搏器细胞的比较识别出143个胎儿特异性基因,包括轴突引导配体如SEMA3A、SLIT2和SLIT3。这些基因在妊娠早期心脏样本中表达最高,而在妊娠中期和成人心脏中下调。构建的GRN显示多个起搏器转录因子(TF)靶向配体基因SEMA3A、SLIT3、EFNB2和CXCL12。这一结果表明神经元招募程序存在协调调控。
通过整合三个发育中人类心脏样本的Visium HD数据集,研究者构建了一个跨SAN轴,从窦角延伸到SAN尾部,由转录组梯度推断,解析了沿该轴的细胞类型的空间组织。副交感神经元优先富集在含有SHPC和SANPC-Hd细胞的区域,但在SANPC-Tl区域明显减少。副交感神经元在SAN和窦角中的定位在多种空间转录组模态中一致,包括Visium SD、Visium HD和Xenium。然而,在较早发育阶段(5-6 PCW,Visium HD),副交感神经元信号在SAN区域稀疏或未明确局限。这表明副交感神经支配存在阶段依赖性出现。对配对H&E图像(Visium HD)和DAPI染色图像(Xenium)的分析进一步揭示,副交感神经元细胞体紧邻SHPC和SANPC-Hd群体。这种空间排列支持了发育中人类SAN中神经-起搏器相互作用的新兴证据。此外,数据进一步解析了它们围绕窦角和SAN头部起搏器群体的优先组织。与这种空间组织一致,几种神经吸引信号通路,包括SLIT-ROBO、semaphorin和ephrin信号,在窦角和SAN头部区域特异性富集,包括在早期发育阶段(5和6 PCW)。这些发现表明,这些区域的SAN起搏器细胞在分子上专门化以招募副交感神经元并与之相互作用。
为了进一步探索发育过程中SAN中的细胞串扰,研究者使用Visium HD数据和CellPhoneDB进行了细胞-细胞相互作用分析,该工作流将配体-受体分析限制在空间共定位的细胞类型和基因表达上。与上述观察一致,推断的相互作用表明SANPC-Hd和SHPC群体与副交感神经元之间的连接比工作心房心肌细胞(aCM)与副交感神经元之间的相互作用更强,特别是通过semaphorin、ephrin和SLIT-ROBO信号。这表明神经元细胞招募的信号源自起搏器细胞。为了验证每种配体和受体的表达谱与预期细胞类型一致,研究者使用snRNA-seq数据进行了CellPhoneDB分析,结果与使用Visium HD数据的预测一致。
在Visium和Visium HD数据中,SAN均显示CX3CR1+巨噬细胞富集。CX3CR1+巨噬细胞被预测为小胶质细胞样群体,表达小胶质细胞标记基因,包括CX3CR1、TREM2、P2RY12、ADGRG1和C3。CX3CL1(CX3CR1的唯一已知配体)由副交感神经元特异性表达。这表明CX3CR1+巨噬细胞被副交感神经元吸引到SAN(与中枢神经系统中相同相互作用导致小胶质细胞有效迁移到神经元一致)。
有研究提出,旁分泌和自分泌谷氨酸能信号可能调节工作心肌细胞和起搏器细胞的放电率。在与胎儿起搏器细胞相比在成人中上调的基因中,研究者识别出谷氨酸能信号通路的几个组件,包括SLC1A3、SLC17A5、GRIA3和GRID2。这些发现支持谷氨酸能信号在成人起搏器细胞中的作用,而在胎儿阶段未清晰观察到这些通路组件的表达。
总之,这些数据定义了妊娠早期一个特定的SAN生态位,在此期间SHPC和SANPC-Hd群体表达神经吸引程序,先于空间受限的副交感神经支配。
结果五、心房心肌细胞的成熟
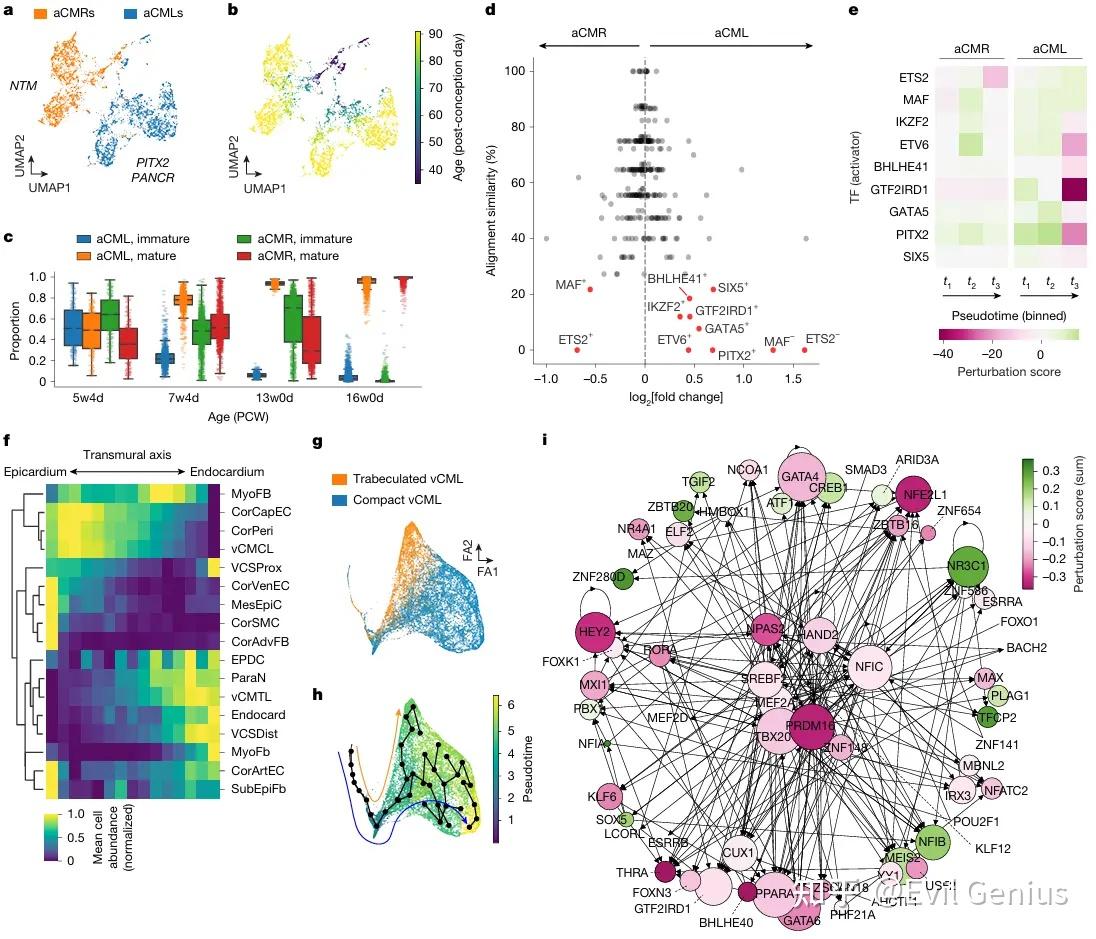
研究者识别出两个转录上不同的工作aCM群体,Visium空间映射显示这些群体分别在左心房和右心房中富集(分别为aCML和aCMR)。aCML以PITX2和PANCR(PITX2相关非编码RNA)表达为标记,这些在人类和小鼠左心房组织中被强调,并且在抑制窦静脉左角起搏器基因程序中重要。PITX2邻近的4q25位点是已知的心房颤动风险位点。aCMR显示参与轴突引导和神经支配的基因表达增加,包括neurotrimin(NTM)、SLIT2和SLIT3以及semaphorin 5A(SEMA5A),这些在妊娠中期均显示表达增加。同源受体由交感神经和副交感神经元表达。这种神经支配促进信号中配体表达的差异与出生后右心房自主神经支配密度升高一致。
为了探索aCM的成熟,研究者使用RNA-seq和ATAC-seq数据构建了MultiVI嵌入。将结果与样本的实足年龄比较,发现年轻心脏中aCML和aCMR谱相对相似,其谱在发育过程中分化。研究者使用7 PCW截止值将aCML和aCMR谱离散为未成熟和成熟版本,然后将这些映射到多个发育年龄的Visium中。结果显示明显趋势,即未成熟状态逐渐被其成熟对应物取代。这表明空间转录组数据支持单细胞数据中观察到的年龄依赖性转变。这种转变在aCML中比aCMR更明显,表明aCMR的成熟在早期阶段延迟。
为了进一步检查这种分化,基于MultiVI潜在空间创建了伪时间排序,其与实足年龄高度相关。SCENIC+调控子轨迹的Genes2Genes比较识别出11个不匹配的调控子,其中9个在aCML中比aCMR具有更高的平均活性,包括PITX2。互惠的ETS和MAF活性表明aCM身份的双功能调节。CellOracle对包括PITX2和ETS2在内的九个候选TF激活因子的计算机扰动预测了aCML和aCMR轨迹中的效应。
总之,aCML和aCMR身份在形态学心房形成后继续分化。
结果六、心室心肌细胞的发育
定义的透壁轴(图1h)提供了一个共同的空间坐标框架,用于比较基因和细胞类型丰度等特征。致密心肌细胞显示出与冠状周细胞和毛细血管内皮细胞相似的透壁分布(它们是同一"致密心肌"生态位的组成部分)。此外,这些内皮细胞与致密心肌细胞一起分散在心室壁中。细胞-细胞相互作用推断表明,致密心肌细胞通过VEGF促进血管生成,靶向这些冠状毛细血管内皮细胞。相比之下,肌小梁心肌细胞与心室传导系统细胞、心内膜细胞和肌成纤维细胞一起定位在心内膜边界。
整合的RNA和染色质可及性谱解析了致密和肌小梁心肌细胞的独立时间轨迹,伪时间与年龄相关。两个轨迹均显示参与心室心肌细胞(vCM)成熟相关通路的基因上调,如"对钙离子的响应"或"心脏收缩的调节"。在这里,成熟表示协调的脂质使用和生物合成、心室致密化的获得以及收缩机制的增强。致密特异性基因,包括CD36、OSBPL2、PITPNC1和SREBF2,富集于脂质转运和代谢,表明为代谢转换做准备。
在靶向常见和致密心肌细胞成熟的GRN中,TF相互作用的中心性揭示了几个TF作为网络中的枢纽,如PRDM16、TBX20、PPARα、GATA4和GATA6,这些与心肌细胞成熟有关。分析还突出了在心肌细胞中较少建立的TF,包括SREBF2,其编码SREBP2。SREBP2是甾醇和脂肪酸合成的关键调节因子,这一代谢通路在心肌细胞成熟中具有关键作用。为了预测TF在致密心肌细胞成熟中的效应,研究者使用CellOracle进行了计算机TF扰动分析。该分析突出了参与左致密vCM成熟的几个TF,包括HEY2、PRDM16、NFE2L1和SREBF2。为了评估PRDM16对与常见和致密心肌细胞成熟特征相关的基因表达的影响,研究者在RUES2来源的心肌细胞中使用了多西环素诱导型PRDM16(Tet-ON)系统。在PRDM16 Tet-ON细胞中,多西环素处理导致成熟评分增加的趋势。在成熟基因集中,差异表达分析识别出几个候选基因,包括NMRK2,其与代谢适应有关。在预定义成熟基因集之外的额外差异表达基因,包括DHCR24、NFE2L2和SLC25A19,进一步指向线粒体和氧化还原相关通路。总之,这些发现表明PRDM16诱导与与心肌细胞成熟相关的代谢和线粒体适应有关。这些数据与最近的研究一致,显示PRDM16促进人类iPS细胞来源心肌细胞的代谢和结构成熟。
这些分析将心室致密化与协调的转录、代谢和血管成熟联系起来。
结果七、T21损害心室致密化
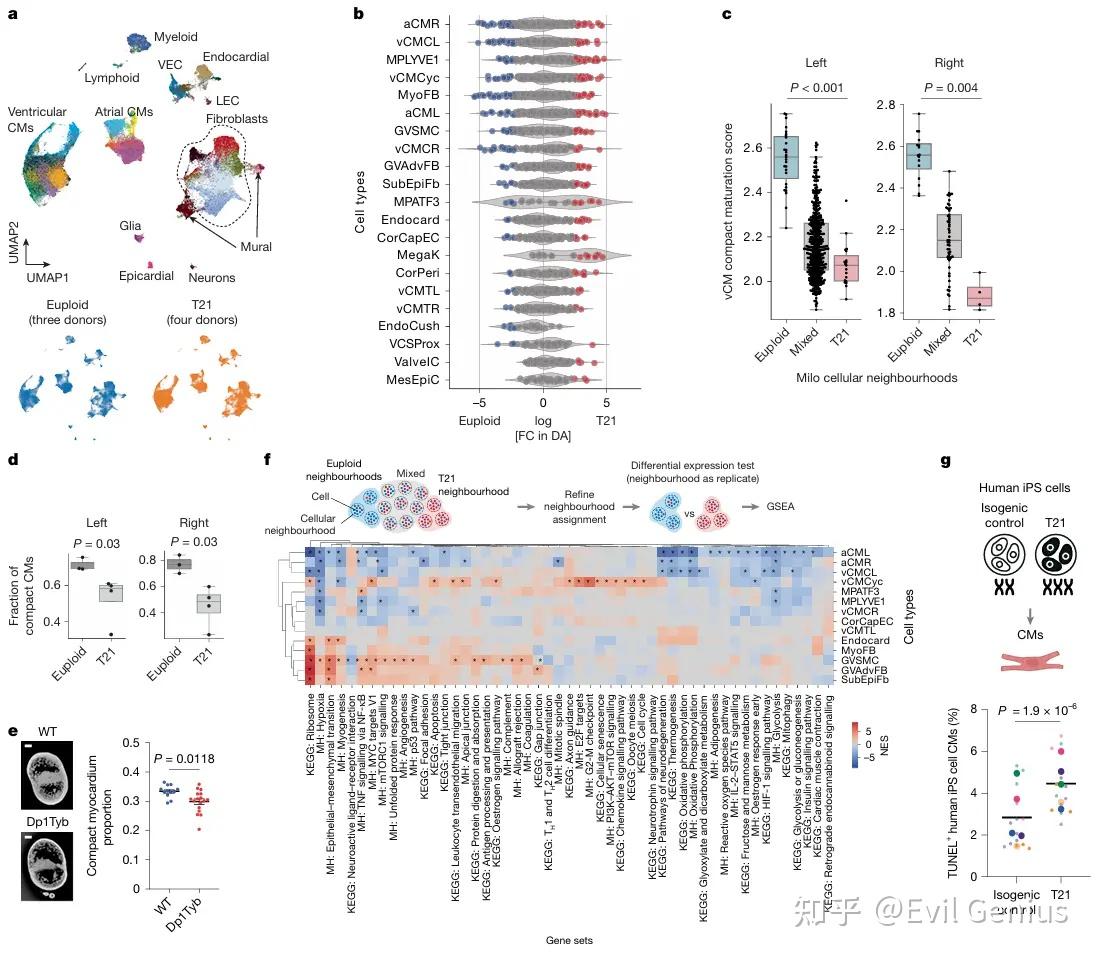
T21是CHD的强风险因素,在T21活产儿中频率为40-50%,并且特别增加室间隔缺损的风险。人类和小鼠模型显示心肌细胞增殖、致密化和线粒体呼吸受损。然而,T21在早期人类心脏发生中的后果仍不完全清楚。研究者从11-14 PCW的T21心脏样本生成了Multiome和Visium数据。经过质量控制,使用在整倍体图谱上训练的CellTypist模型注释了110,000个细胞核,并使用scVI与年龄匹配的整倍体图谱整合。正如预期,差异表达基因富集在21号染色体上。
Milo2识别单细胞k-最近邻图上定义的转录相似邻域中条件相关的细胞丰度变化。将Milo应用于整倍体和T21细胞,揭示了心肌细胞中显著的转录分化。T21富集的vCM邻域具有降低的成熟和致密化评分(源自整倍体轨迹)。这进一步得到T21心脏中致密心肌细胞比例低于整倍体心脏的支持,以及T21致密心肌细胞中常见和致密成熟GRN的活性评分低于整倍体细胞。
为了确定在人类T21数据集中观察到的致密vCM丰度降低是否伴随心室结构的结构改变,研究者使用高分辨率外延显微术(HREM)分析了唐氏综合征小鼠模型(Dp1Tyb),该方法能够三维重建心脏形态。在胚胎第15.5天(E15.5)分析心脏样本,此时CHD(包括心室和房间隔缺损)易于检测。该分析显示,与野生型(WT)同窝仔相比,Dp1Tyb心脏中致密心肌层厚度减少,与结构水平上心室致密化受损一致。值得注意的是,按CHD状态分层Dp1Tyb胚胎显示,与无CHD的胚胎相比,CHD阳性胚胎中致密心肌比例进一步降低。这表明在该模型中,致密化缺陷的严重程度与结构性心脏异常相关。同时,人类T21心脏样本的空间转录组分析显示致密vCM的估计丰度降低,与单核分析一致。尽管人类胎儿组织的直接结构定量受限于二维切片的可用性,但这些跨物种的互补分析一致支持T21背景下心室致密化受损的观点。
为了进一步探索为什么T21心脏显示致密vCM减少,研究者使用CellPhoneDB进行了细胞-细胞相互作用分析,比较人类整倍体和T21细胞。该分析揭示了涉及vCM作为信号发送者和接收者的细胞间信号更广泛的重连。作为信号发送者,T21细胞中的vCM显示对多种靶细胞类型的VEGF信号减少,同时ephrin和teneurin信号增加。作为信号接收者,vCM显示神经调节蛋白信号增加,这是调节心室肌小梁形成和致密化的关键通路,以及IGF和VEGF通路活性降低。这些变化在多种相互作用伙伴细胞类型中一致观察到,表明信号环境的协调转变而非孤立的通路扰动。在这些改变的信号轴中,semaphorin-plexin通路显示出特别显著和结构化的扰动。具体而言,semaphorin配体基因在T21心脏的多种心脏细胞类型中上调,包括SEMA3C。这伴随着心肌细胞中PLXNA4的下调和PLXNA2的上调。鉴于先前的工作显示SEMA3C-PLXNA2-PLXNA4信号是心肌致密化所必需的,这种受体-配体不匹配可能损害semaphorin反应性,进而导致致密vCM数量减少。
为了更好地理解两种核型之间的差异,研究者使用Milo识别的细胞邻域作为生物学重复进行了差异基因表达分析。富集T21或整倍体细胞的邻域在每个细胞类型中分别分析。该分析揭示,与肌发生、缺氧反应和氧化磷酸化相关的通路在T21富集的邻域中被破坏。此外,与凋亡和细胞衰老相关的基因特征在T21富集的邻域中上调,特别是在循环vCM群体中。心内膜细胞,先前被认为与唐氏综合征心脏表型的主要贡献者有关,显示上皮-间质转化特征的改变。为了研究人类和小鼠之间保守的基因程序扰动,研究者从E13.5 WT和Dp1Tyb小鼠心脏生成了scRNA-seq数据。使用scVI整合数据,并进行了基于细胞邻域的差异表达基因分析和基因集富集分析。分析揭示了人类和小鼠之间共享的富集基因集,如氧化磷酸化受损和凋亡通路激活增强。
为了探索T21 vCM中凋亡相关程序的潜在上游调控因子,研究者使用来自T21和年龄匹配整倍体样本的配对snRNA-seq和snATAC-seq数据进行了SCENIC+分析。为了关注与该表型最相关的T21相关细胞状态,研究者将分析限制在循环vCM中富集的Milo细胞邻域,并将推断的GRN修剪为凋亡相关靶基因。该分析突出了几个候选调控因子,包括NRF1、FOXO3、SP3、MAZ和SMAD5,与参与内在凋亡的靶基因相连,包括BCL2L11、CASP3和CYCS。值得注意的是,这些候选TF不由21号染色体编码,表明T21心肌细胞中凋亡相关的转录程序可能反映T21的下游调控后果,而不是21号染色体编码TF的直接剂量效应。
生存和抗凋亡信号与心肌细胞的增殖、致密化和成熟密切相关。凋亡水平增加与CHD和心肌致密化受损有关。为了评估T21对凋亡敏感性的影响,研究者将人类T21诱导多能干细胞及其同基因对应物分化为心肌细胞。使用TUNEL染色,研究者评估了这些培养物中凋亡心肌细胞的比例,发现T21培养物中凋亡心肌细胞比例增加,表明这些细胞对凋亡的易感性增加。因此,心肌细胞凋亡增加可能导致T21中心室致密化受损。
讨论
研究者提出了一个跨越妊娠早期和中期的人类心脏发生的多模态图谱,整合了基因表达、染色质可及性和高分辨率空间分析。该图谱捕捉了包括SAN在内的细胞生态位,通过TissueTypist支持细胞生态位注释,并可用于识别T21中致密vCM的早期扰动。TissueTypist在Visium SD、Visium HD、MERFISH、Xenium和非心脏数据之间转移分层生态位,无需先前的细胞分割。捆绑模型针对胎儿心脏优化,但可为其他组织训练自定义模型。作为监督分类器,TissueTypist无法发现新组织类型,但低置信度预测可能突出未表征的结构。
胎儿起搏器细胞在早期发育中与副交感神经元共定位,但不与交感神经元共定位。与副交感神经支配先于交感神经支配一致,这一发现证实妊娠早期是建立SAN副交感神经支配的关键窗口。这一发育时期与胎儿心率短暂下降相吻合,这提出了早期副交感活动可能有助于起搏器输出的功能调节的可能性。预测的控制起搏器细胞轴突引导程序的GRN突出了典型起搏器TF,包括TBX3、TBX18、SHOX2和ISL1,作为中心调控因子,将其已建立的作用扩展到控制这一神经支配过程。这表明轴突引导不是次要特征,而是人类发育过程中起搏器细胞身份的组成部分。研究者进一步使用高分辨率空间转录组学定义了这些相互作用的空间组织。值得注意的是,副交感神经元细胞体位于核心起搏器群体附近,这为神经-起搏器耦合提供了直接的空间证据。有趣的是,这种组织似乎是逐渐出现的。即在较早阶段(5-6 PCW),副交感神经元信号稀疏或未明确局限,尽管起搏器细胞中轴突引导基因表达强劲。这种时间偏移表明起搏器细胞可能先建立允许性分子环境,然后进行神经元招募。到后期阶段,空间邻近性和区域特异性引导通路激活(包括SLIT-ROBO、semaphorin和ephrin信号)的结合支持了一个模型,其中神经-起搏器相互作用被组织到发育中SAN的空间受限生态位中,这些生态位由特定的细胞组成和信号程序定义。
T21心脏样本显示致密vCM减少,肌发生、氧化磷酸化和缺氧反应程序下调,以及凋亡增加。细胞-细胞通讯分析揭示了T21中涉及vCM的信号相互作用的更广泛重连。vCM的VEGF信号减少值得注意,鉴于遗传证据将VEGF通路扰动与T21中的先天性心脏缺陷联系起来。相反,神经调节蛋白-ERBB信号增加,这是肌小梁形成和心室致密化的既定调节因子,可能反映代偿性或失调的成熟程序。此外,IGF信号减少进一步支持这一解释,与唐氏综合征中报道的全身性IGF缺乏以及IGF1在心肌细胞增殖和生存中的既定作用一致。这些观察表明,T21破坏了一个控制心肌细胞成熟、生存和组织组织的信号通路网络,而不是单一的主导轴。
心脏发育过程中凋亡活性增加可能减少可用于成熟和致密化的心肌细胞池。这一结果与Dp1Tyb小鼠研究一致,将21号染色体基因剂量与心肌细胞增殖和线粒体功能联系起来。将T21与凋亡联系起来的精确分子机制仍有待完全阐明。尽管如此,这些观察提出了改变的心肌细胞生存和成熟通路代表T21心脏发育中早期、潜在可靶向过程的可能。先前报道表明T21破坏多个心脏谱系,共同导致结构畸形。心肌细胞显示比心内膜和垫细胞更大的转录分化,尽管心内膜上皮-间质转化特征也发生改变。然而,这种上调的功能意义仍有待确定。
此处分析的T21心脏采样于11-14 PCW,这一时期无法从二维切片中自信地确定间隔缺损。因此,研究者将分子和细胞变化解释为早期T21相关扰动,可能增加CHD风险,而不是它们导致间隔缺损的证据。因此,未来需要结合体积成像的研究来捕捉结构异常的全部范围。
总之,该图谱推进了我们对人类心脏发育及其在T21中扰动的理解,对疾病建模和再生医学具有重要意义。
方法摘要
预处理和质量控制
单细胞数据分析在Python 3中使用标准科学计算和单细胞分析包进行。对于单细胞转录组数据,应用CellBender算法(remove-background;v.0.2)从每个计数矩阵中去除环境和背景RNA。使用Scrublet(v.0.2.1)去除得分>0.15的双联体。基于以下设置进行质量控制和过滤:基因数>500,总计数>1,000,线粒体百分比<5(细胞核),线粒体百分比<20(细胞),核糖体百分比<5(细胞核),核糖体百分比<20(细胞),红细胞评分<1(细胞核),红细胞评分<2(细胞)。对于Multiome ATAC数据,使用ArchR(v.1.0.2)进一步分析。对于Visium数据,基于H&E图像进行组织学组织注释,去除无关区域("组织外"和"腔")的Visium斑点。
高分辨率空间转录组数据的细胞分割和细胞类型注释
对于Visium HD数据,执行Bin2cell(v.0.3.3),通过使用H&E图像和基因表达数据从2 μm bin数据重建细胞。使用StarDist进行细胞核分割。对于Xenium数据,应用多模态细胞分割算法生成细胞×基因矩阵。对于Visium HD bin2cell细胞和Xenium原始细胞,使用TACCO进一步处理分割的细胞数据,以执行基于参考的组成注释并解决混合细胞信号。这产生了包含213,873个Visium HD细胞(来自3个供体的5个section)和362,277个Xenium细胞(来自2个供体的2个section)的数据集。
细粒度细胞类型的空间映射
对于低分辨率Visium SD数据,使用cell2location(v.0.1)方法空间映射发育心脏的细粒度细胞类型。对于T21 Visium数据,使用来自T21心脏样本的snRNA-seq数据作为cell2location映射的参考。
scRNA-seq和snRNA-seq数据整合
scRNA-seq和snRNA-seq数据按照配套研究所述处理。使用scVI(v.0.19.0)整合单细胞转录组数据,考虑供体、细胞或细胞核和试剂盒10x的分类协变量,以及总计数、线粒体 reads 百分比和核糖体 reads 百分比的连续协变量。
细胞生态位预测和注释
Visium SD数据整合和细胞生态位注释:使用spot级细胞类型丰度估计整合低分辨率Visium空间转录组数据集。使用BBKNN构建批次校正的邻接图,随后进行Leiden聚类和UMAP可视化。 Visium HD细胞生态位预测和注释:使用CellCharter识别细胞生态位,该工具将转录组相似性与空间邻域结构相结合。
TissueTypist
TissueTypist是空间转录组数据中心脏组织生态位的分层分类器。它联合利用Visium SD 3'、Visium SD FFPE和高分辨率Visium HD FFPE训练参考,并为每个spot或窗口产生粗粒度(7类)和细粒度(21叶)生态位注释。
轨迹分析
首先使用Multiome数据和MultiVI获得基于RNA-seq和ATAC-seq数据的潜在空间。该潜在空间用于使用scFates获得二维嵌入和一系列轨迹分析。
心肌细胞基因特征
将SAN起搏器细胞的基因表达谱与其他心肌细胞比较,获得675个DEG。对于胎儿特异性基因特征,将胎儿SAN起搏器细胞群体与成人对应物比较。
GRN分析
使用SCENIC+管道(v.1.0.0)预测TF和推定靶基因以及含有TF结合位点的调控基因组区域。
细胞-细胞相互作用分析
对于scRNA-seq和snRNA-seq数据的分析,使用CellPhoneDB(v.5)分析推断细粒度细胞类型之间的细胞-细胞相互作用。
使用Milo的差异丰度测试
为了识别整倍体和T21心脏样本(或WT和Dp1Tyb小鼠)之间细胞群体的条件特异性变化,使用Milo进行邻域级差异丰度测试。
T21单核Multiome分析
来自四个心脏(11-14 PCW)的质量控制后T21 snRNA-seq数据通过去除非心脏细胞和非可重复细胞进一步策展。使用标签转移方法(CellTypist)分配粗粒度和细粒度细胞类型注释,参考整倍体snRNA-seq数据。
小鼠致密心肌分析
在E15.5收集胚胎心脏并进行HREM处理。以2.5 μm体素分辨率获取三维图像堆栈。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号